综述与进展

大蒜中S-1-丙烯基-L-半胱氨酸的合成及生物学特性研究进展

  • 田灵燕 a ,
  • 王守锋 , a, * ,
  • 曾伟 , b, *
展开
  • a 济南大学化学化工学院 济南 250022
  • b 中国科学院上海有机化学研究所 上海 200032

收稿日期: 2025-05-26

  修回日期: 2025-07-22

  网络出版日期: 2025-08-27

基金资助

国家自然科学基金(31972850)

Progress in the Synthesis and Biological Studies of S-1-Propenyl-L-cysteine from Garlic

  • Lingyan Tian a ,
  • Shoufeng Wang , a, * ,
  • Wei Zeng , b, *
Expand
  • a College of Chemistry and Chemical Engineering, University of Jinan, Jinan, Shandong 250022
  • b Shanghai Institute of Organic Chemistry, Chinese Academy of Sciences, Shanghai 200032

Received date: 2025-05-26

  Revised date: 2025-07-22

  Online published: 2025-08-27

Supported by

National Natural Science Foundation of China(31972850)

摘要

S-1-丙烯基-L-半胱氨酸(S-1-propenyl-L-cysteine, S1PC)是一种天然存在于葱属植物中的含硫氨基酸, 最早于20世纪60年代在大蒜制剂中被发现, 也是老化大蒜提取物(Aged garlic extract, AGE)中的重要组分, 在其发挥药理作用过程中扮演重要角色. 自2016年起, 已发现S1PC具有多种生物活性, 包括抗高血压、抗炎和调节免疫特性. 相较于完整大蒜, S1PC不仅气味更淡、毒性更低, 还能规避消化不良、口臭等不良反应, 对于期望获取大蒜健康益处的人群而言, 是一种更具吸引力的选择. S1PC已被发现在高血压动物模型中有降低血压的作用, 并且在体内、体外均有免疫调节作用. 此外, S1PC具有抗炎作用, 该特性有助于预防或管理与慢性炎症相关的疾病, 如牙龈炎和动脉粥样硬化. 基于上述发现, S1PC被认为与其同分异构体S-烯丙基-L-半胱氨酸(S-allyl-L-cysteine, SAC)一样, 是AGE中另一种重要的、具有药理活性且安全的成分. 综述了S1PC的理化性质等方面最新研究进展, 并提出了其未来潜在的应用发展方向.

本文引用格式

田灵燕 , 王守锋 , 曾伟 . 大蒜中S-1-丙烯基-L-半胱氨酸的合成及生物学特性研究进展[J]. 有机化学, 2026 , 46(1) : 74 -86 . DOI: 10.6023/cjoc202505028

Abstract

S-1-Propenyl-L-cysteine (S1PC), a sulfur-containing amino acid naturally present in Allium sativum and first iden- tified in garlic preparations in the 1960s, plays an important role in aged garlic extract (AGE) and a key pharmacological role. Since 2016, it has been found to possess a variety of biological activities, including anti-hypertensive, anti-inflammatory and immunomo- dulatory properties. S1PC has less odour and is less toxic than whole garlic, making it a more attractive option for those looking to reap the health benefits of garlic without the adverse side effects of indigestion and bad breath. S1PC has been found to have blood pressure lowering effects in animal models of hypertension and has immunomodulatory effects both in vivo and in vitro. In addition, S1PC has anti-inflammatory effects, which may help prevent or manage diseases associated with chronic inflammation, such as gingivitis and atherosclerosis. Based on the above findings, S1PC is considered to be another important, pharmacologically active and safe component of AGE, along with its isomer S-allyl-L-cysteine (SAC). In this review, the latest research progress on the physicochemical properties and other aspects of S1PC is summarized, and the possible directions of its application development in the future are also proposed.

大蒜是一种百合科葱属的多年生草本植物, 具有重要的药用和使用价值. 自古以来, 它就被用作调味料以增强食品的感官特性, 并作为家庭疗法用于治疗各种疾病. 相关科学研究报道大蒜具有抗氧化、抗真菌、抗高血压、抗高脂血症和免疫调节等特性[1,2]. 其中发挥药理作用的化学成分大多是大蒜中存在的各种含硫化合物, 如大蒜素、阿霍烯、烯丙基多硫化物和其他从蒜氨酸代谢而来的挥发性有机硫化合物. 多篇研究揭示了大蒜素及其转化的化学物质的特性, 表明其有抗菌、抑制胆固醇和抗癌的作用[3-5]. 随着研究的深入, 大蒜素的疏水性以及不稳定性[6,7]也被研究人员相继探索出来, 因此人们对其是否真是大蒜中活性有益的成分产生怀疑[6,7-8].
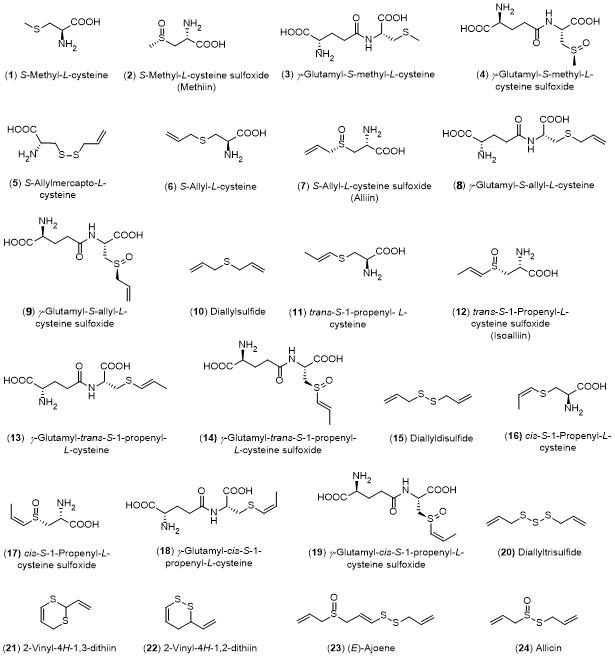
除此之外, 甲基蒜氨酸(S-甲基-L-半胱氨酸亚砜, Methiin)、蒜氨酸(S-烯丙基-L-半胱氨酸亚砜, Alliin)、异蒜氨酸(反式-S-1-丙烯基-L-半胱氨酸亚砜, Isoalliin)、S-烯丙基-L-半胱氨酸(SAC)、S-甲基-L-半胱氨酸(SMC)和S-1-丙烯基-L-半胱氨酸(S1PC)等水溶性含硫化合物(图1)同样引起了研究人员的广泛关注. 这些化合物在陈年大蒜提取物(AGE)中具有重要作用, 其中S1PC作为SAC的同分异构体, 近年来受到了特别关注. S1PC的理化性质逐渐被人们所熟知, 多篇研究报道也探索了其作为合成反式S-1-丙烯基-L-半胱氨酸亚砜的中间体的有机合成途径[9-10]. 除此之外, 研究表明S1PC不仅具有良好的口服生物利用度, 还在免疫调节、抗炎和抗高血压等方面展现出显著的药理活性. 本文从S1PC的化学合成、生物合成、分析方法和抗炎、抗高血压等方面综述了S1PC的化学和生物学特性, 并对其未来应用方向进行了展望.
图1 大蒜中含硫化合物的化学结构式

Figure 1 Chemical structures of sulfur-containing compounds in garlic

1 S1PC的物理化学性质、分布提纯及合成方法

1.1 S1PC的物理化学性质
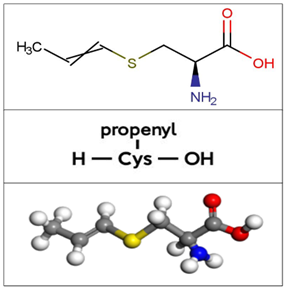
S1PC是一种半胱氨酸衍生物(图2), 与SAC互为同分异构体, 具有顺式和反式两种构型. 该化合物是一种水溶性的白色或米白色固体, 无明显强烈气味, 在室温储存条件下是稳定的(室温180天无明显变化)[11], 酸度系数pKa值为(2.072±0.10), 分子量和分子式分别为161.22, C6H11NO2S, 其IUPAC名称为(2R)-2-amino-3- [(E)-prop-1-enyl] sulfanylpropanoic acid. S1PC的沸点为(301.1±37.0) ℃/8.0 kPa, 密度、闪点和汽化焓分别为(1.204±0.06) g/cm3, (135.9±26.5) ℃, (59.5±6.0) kJ/ mol, 比旋光度为[α]25 D+59.4 (c 1.27, 0.25 mol/L NaOH). 因其分子骨架中含有硫醚基团, 可被氧化为亚砜或砜, 双键可参与加成反应, 氨基和羧基则能通过缩合反应形成肽键或与金属离子配位.
图2 S-1-丙烯基-L-半胱氨酸的化学结构

Figure 2 Chemical structure of S-1-propenyl-L-cysteine

1.2 S1PC的分布及提纯

S1PC是一种存在于葱、洋葱和大蒜等葱属植物中的含硫化合物, 其含量因植物品种和种植环境不同也随之改变[12]. 在新鲜大蒜中含量较低, 但随着大蒜的老化, 其浓度会显著上升, 最终几乎能达到与SAC相近的水平[13]. 目前大蒜中含硫化合物的萃取方法多样, 常见的有水蒸气蒸馏法、溶剂萃取法、微波辅助萃取法、超声波辅助萃取法、超临界流体萃取法、分散剂液相萃取法以及加压液体萃取法等. 大蒜粉、大蒜油和AGE(包含S1PC)等大蒜制剂大多通过以上方法制得[14]. 大蒜粉是将生大蒜切片或压碎, 脱水, 然后粉碎成粉末制成[8]. 大蒜油由大蒜鳞茎于混合器中轻度研磨、加蒸馏水混合后水蒸气蒸馏制备[14]. AGE则是通过溶剂萃取法, 用水和乙醇溶液提取切片的大蒜瓣, 经过较长时间段孵育后将该提取物过滤, 经降温浓缩后制得, 产物中含有 S1PC、SAC等水溶性含硫化合物[15]. 从AGE中分离提纯出S1PC这类含硫化合物, 可能需要借助液相色谱串联质谱(LC-MS/MS)、高效液相色谱(HPLC)等专业技术手段来实现[16].

1.3 S1PC的合成方法

1.3.1 化学合成

洋葱(Allium cepa L.)和大蒜(Allium sativum L.)作为葱属植物的典型代表, 富含多种具有生物活性的含硫化合物. 其中从洋葱中分离出的异蒜氨酸, 不仅是特有的催泪化合物的前体物质, 且具有一定的药理活性[4,9-10,17-18]. 然而, 该化合物在植物体内含量较低(不到0.2%), 且同时存在具有相似化学性质的多种含硫化合物, 增加了纯化提取的难度. 为突破这一限制, 研究人员开发了化学合成路线, 其关键策略是先合成前体物质S1PC[9,10,19,20], 再通过选择性氧化获得目标产物. 又因反式S1PC及其前体物质在葱属植物中天然存在, 所以研究人员较多致力于反式S1PC的合成.
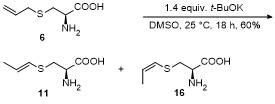
早在1966年, Carson和Boggs课题组[19]就提出一种双键异构化的简便方法来合成S1PC (Scheme 1). 该小组利用叔丁醇钾提供强碱性条件, 通过SAC的双键异构化反应合成顺反异构的S1PC, 并且两种构型的量基本相等. 但此反应条件较为苛刻, 需要控制湿度等反应条件, 且在强碱性的条件下引起消旋化反应, 从而影响所得产物的光学纯度[21-23]. 除此之外, 后处理过程也相对复杂, 需要经过多次浓缩、结晶等操作来提纯产物.
图式1 Carson和Boggs合成S1PC的路线

Scheme 1 Carson and Boggs' route to the synthesis of S1PC

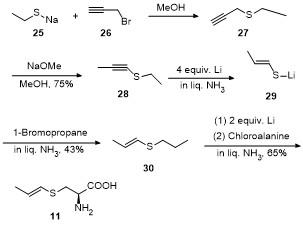
Nishimura小组[20]在1975年提出了步骤较多的五步合成法(Scheme 2), 成功实现了S1PC的立体选择性合成. 此方法是先将乙硫醇钠与丙炔基溴反应生成1-丙炔基乙基硫醚, 然后在碱性条件下将其异构化为2-丙炔基乙基硫醚. 在此基础上再利用金属锂和液氨进行还原偶联反应, 最后合成了反式S1PC. 从整体来看, 该方法为S1PC的制备提供了有效途径, 但合成步骤较为繁琐且需要液氨等反应溶剂, 限制了其大规模生产的应用. 在未来研究中可探索更为简洁高效的合成路径, 以提升S1PC的合成效率和应用价值.
图式2 Nishimura合成S1PC的路线

Scheme 2 Nishimura's route to the synthesis of S1PC

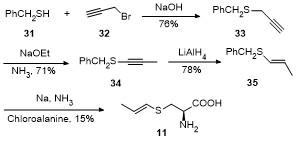
1989年Parry等[24]为获取足够量的化合物用于同位素稀释实验, 设计了一种新的合成路线以获得S1PC (Scheme 3). 该方法是以苄硫醇为原料, 利用碱性条件进行烷基化和异构化反应, 并用氢化铝锂将碳碳叁键还原成反式双键, 最后进行偶联, 经四步反应成功合成S1PC. 该方法前几步产率都相对较高, 基本维持在70%以上, 但最后一步的产率仅有15%, 在后续的研究中可进一步优化合成条件, 提高产率.
图式3 Parry合成S1PC的路线

Scheme 3 Parry's route to the synthesis of S1PC

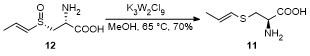
2001年, Herndon等[25]借鉴Nuzzo等[26]报道的方法, 采用钨低价络合物将S-1-丙烯基-L-半胱氨酸亚砜还原为S1PC (Scheme 4), 该亚砜还原策略为S1PC的合成提供了一种温和、有效和高选择性的方法.
图式4 Herndon合成S1PC的路线

Scheme 4 Herndon's route to the synthesis of S1PC

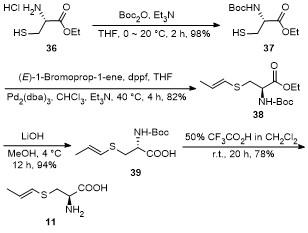
2006年, Namyslo和Stanitzek等[9]开发了一种基于钯催化C—S偶联的策略, 经过四步合成反式S1PC (Scheme 5). 他们以Boc保护基对L-半胱氨酸乙酯的氨基进行保护, 随后经钯催化体系与(E)-1-溴丙烯发生偶联反应, 再依次进行酯基水解和Boc脱保护, 最终合成目标产物S1PC. 虽然该方法的步骤较多, 但其每一步的产率都相对较高, 分别为98%、82%、94%和78%. 该合成路径效率高、产率优良, 在反式S1PC的合成中展现出显著优势.
图式5 Namyslo和Stanitzek合成S1PC的路线

Scheme 5 Namyslo and Stanitzek's route to the synthesis of S1PC

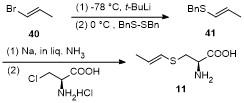
2011年, Lee小组[10]也利用(E)-1-溴丙烯合成了反式S1PC (Scheme 6). Lee小组在叔丁基锂条件下用二苯基二硫化物处理(E)-1-溴丙烯, 随后使用金属钠和液氨与3-氯-L-丙氨酸盐酸盐偶联得到反式S1PC. 尽管此方法产率较低, 最终计算得到的总产率只有13%, 但其通过还原-烷基化策略, 避免了复杂的保护基操作和金属催化步骤, 为含S1PC的合成提供了新方案.
图式6 Lee合成S1PC的路线

Scheme 6 Lee's route to the synthesis of S1PC

尽管现有的合成方法已成功制备S1PC, 但仍存在反应条件苛刻、步骤繁琐等局限性. 未来研究应致力于开发反应条件更温和、操作更简便且产率更高的合成路径. 此外, Kodera等[27]研究发现, S1PC在酸性条件下会发生顺反异构体的可逆转化, 这一现象凸显了立体选择性合成的重要性. 因此, 如何实现S1PC的高选择性、高效率立体定向合成, 并实现较大量的制备, 仍需进一步深入探索.

1.3.2 生物合成

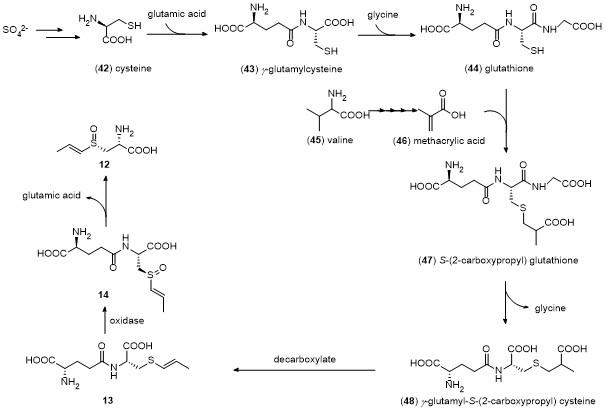
葱属植物利用土壤中的硫酸盐($\mathrm{SO}_{4}^{2-}$)用于有机硫化物的生物合成. 其中吸收的硫酸盐被结合到L-半胱氨酸中[28], 经谷氨酰化和甘氨酰化两次转化生成谷胱甘肽, 亦或是被结合到蛋白质中[29]. 生成的谷胱甘肽通过巯基进行烷(烯)基化, 形成一系列的含硫分子. 最后这些含硫分子再通过去甘氨酸、脱羧、S氧化和脱谷氨酰化等步骤, 最终产生S-烷(烯)基-L-半胱氨酸亚砜[3,4,30-33]. Parry等[4]利用同位素标记法, 阐明了洋葱中形成S-1-丙烯基化合物(包括异蒜氨酸)的生物合成路径[24,34] (Scheme 7).
图式7 洋葱中含硫化合物的生物合成路径

Scheme 7 Biosynthetic pathways of sulphur-containing compounds in onions

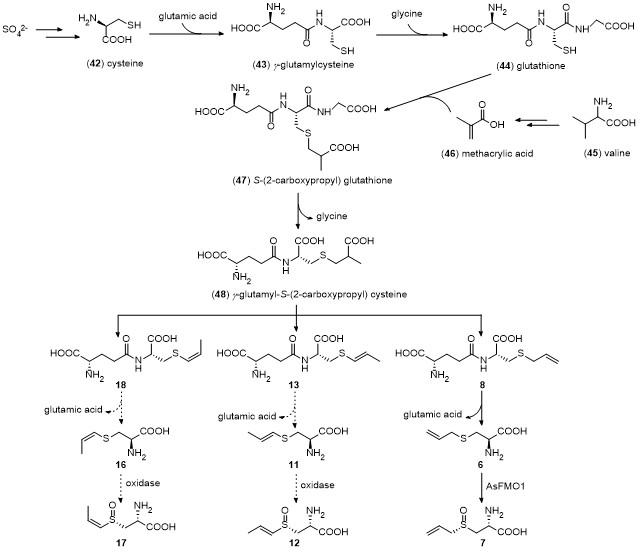
基于20世纪后期开展的放射性示踪实验及化学分析结果表明, 向大蒜等植物供给硫酸盐得到的S-(2-羧基丙基)谷胱甘肽47, 是蒜氨酸和异蒜氨酸的生物合成中间体[31,35], 这提示大蒜中蒜氨酸和异蒜氨酸大概率通过同一生物合成途径生成(Scheme 8). 大蒜中含有SAC及其前体化合物8[3,27,36], 但在蒜氨酸的生物合成过程中, S-氧化与脱谷氨酰化这两步反应的先后顺序仍未明确. 含黄素的单加氧酶(FMO)在植物体内的S氧化过程中发挥关键作用, 其催化的S氧化反应依赖于烟酰胺腺嘌呤二核苷酸磷酸(NADPH)和黄素腺嘌呤二核苷酸(FAD)的共同参与[32,37]. Yoshimoto等[32-33]研究发现, 重组ASFMO1蛋白首选SAC而不是前体化合物8作为S氧化底物, 表明在大蒜中蒜氨酸是由γ-谷氨酰转肽酶(γ-glutamyl transpeptidase, GGT)催化前体化合物8脱谷 氨酰化, 然后经ASFMO1氧化SAC形成的[38,39]. 上述研究结果表明, 在大蒜中, 通过γ-谷氨酰-S-烯丙基-L-半胱氨酸亚砜(化合物9)形成蒜氨酸的途径可能并不存在. 在大蒜愈伤组织中添加SAC也可以产生蒜氨酸[40], 并且大蒜体内天然存在SAC[41-42], 这一实验结果进一步佐证了SAC向蒜氨酸转化的生物合成途径的存在.
图式8 大蒜中含硫化合物的生物合成路径

Scheme 8 Biosynthetic pathways of sulfur-containing compounds in garlic

The dashed arrow represents the reaction inferred from the biosynthesis pathway of alliin reported by Yoshimoto et al.

2024年, 吴文卉等[43]利用基因克隆技术制备了Ac- FMO蛋白, 经表达分析等实验后, 构建该基因的酵母表达载体, 完成体外酶活性验证. 研究结果表明, AcFMO重组蛋白能够催化SAC硫氧化生成蒜氨酸, 确定洋葱中蒜氨酸的合成途径与大蒜一致, 即先脱谷氨酰化, 然后S氧化生成蒜氨酸, 与Yoshimoto等的结果一致. 根据上述研究结果, S氧化和脱谷氨酰化的顺序可能在不同葱属物种和S-烷(烯)基-L-半胱氨酸亚砜之间有所不同. 由于蒜氨酸与异蒜氨酸在大蒜内具有相同的中间体47, 所以在大蒜中异蒜氨酸的产生机制可能与蒜氨酸相同, 是目前在大蒜内S-1-丙烯基-L-半胱氨酸亚砜(异蒜氨酸)生物合成的最可能途径(Scheme 8).

2 大蒜及其制剂中含硫化合物的分析检测方法

葱属植物及其制剂含有多种特征性的含硫化合物. 这些化合物可分为植物细胞破碎前的风味前体物质以及细胞破碎后的风味成分等[44]. 气相色谱(GC)方法具有突出的分离能力, 通常用于分析高温下能气化且稳定的挥发性物质, 所以在GC分析过程中, 必须考虑高温下被分析物是否会发生分解. 葱属植物细胞破碎后, 酶解产生的风味物质稳定性较差, 如大蒜素(Allicin)等, 不耐高温, 采用气相色谱法在分析过程中会发生降解, 且热分解产生的峰会对分析过程产生干扰[45-46]. 因此, 该方法的适用性受到了极大的限制[47-48].
高效液相色谱(HPLC)法可规避高温条件对分析物的影响[49], 并且可以根据被分析化合物的差异, 针对性选择合适的色谱柱和流动相进行分析. Lawson等[50]开发了一种基于高效液相色谱的分析方法, 该方法通过在220 nm紫外吸收波长下检测, 用于分析S1PC. 然而, 在经过酶处理后的大蒜样品中, S1PC的特征峰部分被其他成分的峰掩盖, 导致检测结果受到干扰. 另一方面, Yamasaki等[51]采用反相高效液相色谱法, 在210 nm紫外吸收波长下对大蒜样品进行分析, 成功分离并检测到11种半胱氨酸衍生物, 包括蒜氨酸、异蒜氨酸和脱氧蒜氨酸(SAC). Yamasaki等的研究中并未检测到S1PC的存在. 高效液相色谱法操作简便, 仪器设备成本相对较低, 但蒜氨酸(Alliin)等风味前体物质极性较大, 很难达到所需的分离效果, 且基于UV吸收的检测, 存在基质效应干扰和相关含硫化合物紫外吸收能力相对较弱的问题. 事实上, 在分析大蒜中含硫化合物时, 多数研究者都遭遇了其他组分的干扰问题, 因此专门检测含硫化合物的方法亟待开发.
液相色谱串联质谱(LC-MS/MS)则能够有效避免基质效应所带来的干扰, 且无需对样品进行衍生化的前处理, 极大地简化了操作流程, 提高了检测效率. 基于这一技术优势, Kim等[52]巧妙地提出了一种创新性的检测方案, 采用UPLC/ESI-MS/MS技术, 以C18色谱柱配合梯度洗脱, 质谱在正离子模式下通过多反应监测(MRM)进行检测, 能够同时对大蒜发酵液中11种有机硫化合物进行精准的检测与定量分析, 其中包括备受关注的S1PC. 与此同时, Matsutomo等[36]成功开发了一种改善传统柱后HPLC的方法, 利用六碘铂酸盐试剂(HIPR, 一种深红色物质, 当与硫化物混合时, 颜色会变为黄色)检测含硫化合物[36,53,54]. 此方法不仅能够在一次运行中分离与检测大蒜制剂中超过二十种含硫化合物, 而且在LC-MS分析中也适用. 令人兴奋的是该方法证明了顺式S1PC在AGE中存在, 并且其含量随老化过程增加[20,29]. 作者得出结论, 所建立的HPLC方法可能有助于鉴定天然产物中未知的含硫化合物, 并可用于阐明它们的生物合成机制. 2020年, Liu课题组[55]成功建立了一种超高效液相色谱-串联质谱(UHPLC-MS/MS)的方法, 该方法不仅能够同时检测大蒜中的包括S1PC在内的7种风味前体物质, 还能精准测定21种游离氨基酸的含量. 该小组的方法前处理过程简洁, 且具有绿色环保、准确可靠的特点, 为深入研究大蒜中功效成分的代谢机制和大蒜老化过程中含硫化合物的含量变化提供了有力的技术支持.
以上结果表明, 尽管在利用仪器检测及定量大蒜中含硫化合物方面已经取得了诸多令人振奋的进展, 但对于相关化合物的分离工作仍然面临着诸多挑战, 有待进一步的探索与突破. 此外, 一个不容忽视的问题是, 目前市场上缺乏包括S1PC在内的大蒜及其制剂的商业化标准品. 这一现状在很大程度上限制了检测方法的广泛推广和普及应用, 制约了相关研究的进一步发展.

3 S1PC的药物化学生物学研究

在天然产物研究领域, 大蒜相关化合物的探索一直热度不减. 蒜氨酸、SAC等一系列水溶性化合物已展现出多样生物学特性, 如抗氧化、降低胆固醇和抗癌等[2,56]. 其中SAC已被广泛研究, 具有一定的安全性和较高的生物利用度[57-58], 而S1PC作为其中独特的一员, 自20世纪60年代被发现以来, 关于其生物学活性的相关报道较少, 直到近几年其奥秘才逐渐被揭开.

3.1 抗高血压

在世界范围内, 因生活方式或饮食而罹患相关疾病(如高血压, 糖尿病和高血糖)的人数日益增加, 其中高血压是中风、心肌梗死和肾功能障碍等[59-60]心血管疾病的主要危害因素, 也是现代人们生活中非常普遍的健康问题[61-62]. 在多项临床研究中大蒜补充剂(是由脱水生大蒜粉、大蒜油、AGE等制成)的降压效果已得到证实. 在2013年之前进行的20项临床研究的荟萃分析显示, 大蒜补充剂降低了众多患者的血压[63]. 目前虽缺乏直接针对S1PC的人体临床试验, 但多项涉及AGE的研究间接支持了S1PC的抗高血压作用. Ried等[64-65]进行的多项关于AGE的随机对照试验表明, AGE可降低高血压患者的收缩压(SBP). 在一项针对未控制高血压患者的试验中, AGE治疗8周后患者血压有所降低, 与对照组形成显著差异.
自发性高血压大鼠(SHR)已被用作人类原发性高血压的实验动物模型. Matsutomo等[66]研究并比较了AGE及其两种主要成分SAC和S1PC对SHR的降压作用, 这些小鼠分别口服AGE (2 g/kg)、SAC (7.9 mg/kg, 与AGE中所含SAC剂量相同)和S1PC (6.5 mg/kg, 与AGE中所含S1PC剂量相同), 持续给药10周后, AGE和S1PC治疗显著降低了SHR的SBP, 而SAC治疗的小鼠高血压虽发展延迟, 但与对照组差异不明显. 完成实验后该小组对SHR收集的血浆样品进行代谢组学分析, 结果表明S1PC能够影响7种代谢物(表1)的血浆浓度. 线性回归分析显示, SBP与血浆中五种内源性代谢物甜菜碱、色氨酸和3种溶血磷脂酰胆碱(LysoPCs)水平相关, 表明它们更可能与高血压有关. 通过代谢组学研究, Matsu- tomo等认为, S1PC可能通过影响甘氨酸、丝氨酸和苏氨酸等的代谢发挥其降压作用, 但其作用的潜在机制尚待进一步研究. 2019年, Matsutomo小组[67]又对S1PC的降压机制进行了探讨. 该小组通过给SHR单次口服S1PC后, 发现血浆中组氨酸水平在1.5~3.0 h显著升高, 随后降至对照组水平. 预先注射噻普酰胺(组胺H3受体拮抗剂)可抑制S1PC的降压作用, 且噻普酰胺单独使用对血压无影响. 这些结果表明S1PC可能通过调节组氨酸代谢, 作用于中枢组胺H3受体, 从而降低血压. 但研究存在样本量小的局限性, 后续需更大样本量研究确定S1PC对组氨酸代谢的作用方式及在SHR中的具体效果.
表1 SHR口服S1PC后血浆中代谢产物水平的变化

Table 1 Changes in plasma levels of metabolites after oral administration of S1PC in SHR

Metabolite Control vs
WKYa
S1PC vs
Controla
Betaine ↑↑b
Tryptophan ↓↓ ↑↑
LysoPC (16∶0) ↓↓ ↑↑
LysoPC (18∶3) ↓↓ ↑↑
LysoPC (20∶4) ↓↓
3-(Acetyloxy)-2-hydroxypropyl icosanoate ↓↓
Caproic acid ↑↑

a WKY rats and the control SHR group received oral administration of distilled water once daily for 10 weeks; the S1PC group received oral administration of 6.5 mg per kilogram body weight once daily for 10 weeks. b ↑: up-regulated (p<0.05), ↑↑: up-regulated (p<0.01), ↓: down-regulated (p<0.05), ↓↓: down- regulated (p<0.01).

近期, Ushijima等[68]报道了大蒜提取物中S1PC对SHR血压和外周循环的影响. 实验表明, 给SHR单次口服S1PC在每千克体重6.5 mg (6.5 mg/kg BW)时, 3 h后SBP显著降低约10%, 随后逐渐恢复基线水平, 且该效果呈剂量依赖性, 在6.5 mg/kg BW剂量时效果最佳. 在外周血流变化方面, SHR尾血流量显著低于Wistar Kyoto大鼠(WKY), 6.5 mg/kg BW的S1PC给药3 h后能显著增加SHR尾血流量, 对WKY无此作用. 研究表明, S1PC单次口服对SHR有降压作用, 且与外周循环改善有关, 其降压机制可能与改善外周血管阻力相关, S1PC对正常血压的WKY大鼠无影响, 说明其作用具有特异性. 上述研究结果揭示了S1PC是AGE中降压作用的关键活性成分, 并表明了其降压机制为S1PC的药用价值提供了依据.

3.2 抗炎活性

炎症作为机体对各种刺激的复杂防御反应, 有助于机体抵御病原体入侵和修复受损组织, 但过度或持续的炎症反应则会引发一系列健康问题, 从常见的心血管疾病[69-70]到慢性牙周炎等, 严重影响人们的生活质量与身体健康. 在探索对抗炎症的有效手段过程中, 天然产物因其安全性高、作用机制多样等优势, 逐渐成为研究热点. 众多研究表明, AGE在抗炎领域展现出令人瞩目的潜力, 而在AGE的诸多成分中, S1PC作为关键活性成分之一, 正逐步揭示其独特且强大的抗炎作用, 为炎症相关疾病的防治带来新的希望与思路.
2019年, Ohtani等[70]针对AGE能够缓解牙龈炎的现象对其作用机制展开了研究. 研究人员在对人牙龈上皮细胞的研究中显示, S1PC能抑制促炎因子TNF-α诱导的细胞间粘附分子-1 (ICAM-1)蛋白水平升高, 且该作用可能发生在翻译后水平, 同时S1PC与抗菌肽hβD3具有协同作用. 而AGE中的SAC和S-烯丙基巯基-L-半管氨酸(SAMC)可剂量依赖性地减弱TNF-α诱导的白细胞介素-6 (IL-6)分泌, 不过S1PC在这方面并无效果. 令人兴奋的是, Suzuki等[71-72]发现S1PC可以通过诱导髓样分化反应蛋白MyD88的降解来抑制Toll样受体(Toll-Like Receptors, TLR)介导的IL-6产生, 这表明在牙龈组织炎症调节中, AGE中的不同含硫氨基酸发挥着不同作用, S1PC主要通过调节ICAM-1表达来减轻炎症, 对IL-6分泌的影响较小, 但其可以通过其他途径来影响IL-6的分泌. 作者认为, AGE中含有的三种含硫氨基酸在减轻人类牙龈上皮细胞炎症方面具有协同作用, 为AGE改善牙龈炎提供了理论依据.
动脉粥样硬化是一种血管慢性炎症疾病, 与巨噬细胞极化密切相关. 先前研究表明, AGE及其含硫成分对血管疾病有保护作用, 还能影响巨噬细胞数量. Kunimura等[73]研究发现, AGE中的S1PC能改善TNF-α引起的人脐静脉内皮细胞屏障功能障碍, 通过抑制RhoA和Rac信号通路, 减少肌动蛋白过度聚合, 降低血管通透性, 这可能是AGE对动脉粥样硬化有益的原因之一. 在动脉粥样硬化中, M1巨噬细胞会促进炎症和斑块形成, M2巨噬细胞则能减轻炎症、修复组织. 在Miki等[74]的研究中, S1PC可促进IL-10诱导的M2c巨噬细胞极化, 增加M2c巨噬细胞数量, 减少M1巨噬细胞数量, 抑制炎症反应, 减缓动脉粥样硬化发展. M2巨噬细胞已知可抑制多种慢性炎症病, 如糖尿病、慢性肾病和自身免疫性疾病等[75-77]. 该研究为AGE抑制动脉粥样硬化斑块形成并增加动脉中M2/M1巨噬细胞比例提供了证据, 表明AGE和S1PC可能是这些疾病的潜在有益剂.
上述研究表明, S1PC作为AGE的重要成分, 其抗炎作用具有多方面优势. 在改善血管内皮屏障功能时, 能够在不影响细胞正常增殖等功能的前提下, 有效抑制炎症引发的血管通透性增加问题. 并且S1PC可通过特定的信号通路, 高效地促进M2c巨噬细胞极化, 对维持体内巨噬细胞的平衡状态意义重大. 这些特性使得S1PC在炎症相关疾病的预防和治疗方面展现出显著的应用潜力, 未来有望基于这些作用开发出更有效的治疗方案.

3.3 调节免疫系统

免疫调节是维持机体免疫平衡的关键机制, 在保障人体健康方面发挥着核心作用. 有研究推测, 大蒜中含有许多对免疫系统有益的生物活性化合物, 具有一定的免疫调节作用. 为研究含硫化合物的免疫调节作用, 研究人员进行了各种体内体外实验[78-80]. 大蒜素、烯丙基甲基硫化物、双烯丙基多硫化物和阿霍烯等是大蒜中含有的疏水性化合物[81]. 在体内研究中, Kang等[78]发现大蒜素在小鼠腹腔巨噬细胞中诱导抗肿瘤活性, 并以剂量依赖性方式增加了TNF-α和NO的产生, 而TNF-α和NO可能是大蒜素处理的巨噬细胞中抗肿瘤活性的主要介质. 2015年Hassouna等[79]在对Wistar大鼠(标准化实验动物模型)施用二嗪农之前30 min用大蒜油处理, 可以使大鼠的几个免疫学参数正常化, 例如它们的血清总免疫球蛋白浓度和T细胞亚型CD4. Arellano等[80]通过分析对照组、糖尿病组(注射链脲佐菌素诱导糖尿病)和大蒜素治疗组(糖尿病大鼠给予16 mg/kg/d大蒜素灌胃)大鼠的血糖、体重、氧化应激分子和促炎细胞因子的状态发现, 大蒜素有维持糖尿病大鼠体重和降低血糖的作用, 且降低了多尿和N-乙酰-β-D-葡糖胺酶(NAG)的排泄, 其中氧化应激和促炎细胞因子也因大蒜素治疗而减少. 体外研究显示, 大蒜中含有的其他疏水化合物, 包含双烯丙基三硫化物(DATS)、双烯丙基二硫化物(DADS)和双烯丙烯一硫硫化物(DAS), 是大蒜素分解或聚合后的产物, 能够降低NO的产生和一氧化氮合成酶(iNOS)的表达, 抑制核转录因子-κB (NFκB)的活性和抗炎因子的产生[82-84].
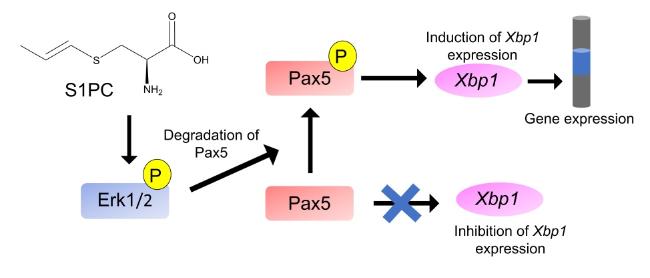
S1PC与大蒜素同属大蒜活性物, 基于大蒜素在免疫调节方面的显著作用, 以及S1PC和大蒜素来源上的同源性, 研究人员对其免疫调节作用进行了一定的研究. 2016年Suzuki等[85]通过对小鼠的体内和体外实验证实, S1PC能够增加免疫球蛋白A (IgA)生成细胞的数量, 从而使IgA增加. 机制上, S1PC可诱导浆细胞分化诱导剂X-盒结合蛋白1 (Xbp1)的mRNA的表达, 并伴随着细胞外调节蛋白激酶1/2 (Erk1/2)信号通路的激活和配对盒蛋白5 (Pax5)的降解(图3). IgA不仅是肠道中最丰富的同种型抗体, 而且能作为第一道防线保护肠道粘膜表面[86-88]. 由此可见, S1PC能够增强肠道对病原体的免疫应答, 在人类免疫反应中S1PC或许也能通过增加IgA数量和调节Xbp1等转录因子, 影响免疫细胞的分化和功能, 增强免疫应答.
图3 S1PC诱导Xbp1表达的推测机制

Figure 3 Putative mechanism of S1PC-induced Xbp1 expression

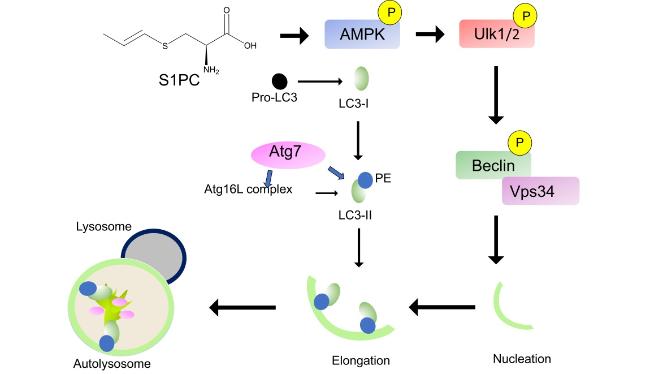
自噬是异常蛋白质、蛋白质聚集体和受损细胞器等细胞组分的主要降解程序[89-91], 能够维持细胞内环境稳定, 并调节多种细胞事件. 目前已有多项研究证明自噬可调节免疫应答和免疫细胞分化[92-96]. 2019年Suzuki小组[72]又对以上发现的机制进行深入研究, 发现S1PC能促进AMP-活化蛋白激酶(AMPK)和unc-51样激酶1/2 (Ulk1/2)的磷酸化, 并抑制哺乳动物雷帕霉素靶蛋白(mTOR, 自噬的抑制因子)的磷酸化来启动自噬的初步骤. 这些步骤促进了吞噬细胞的延长, 并通过自噬过 程中的调节蛋白(Beclin)和囊泡分选蛋白34 (VPS34)的复合物磷酸化来完成(图4). S1PC还增加了微管相关蛋白1轻链3 (LC3-I)和脂化LC3 (LC3-II)的水平. LC3-II通过自噬体膜上的衔接蛋白与靶蛋白(包括Pax5)相互作用, 最后靶蛋白被自噬-溶酶体降解系统降解. 作者得出结论, S1PC通过激活Erk1/2和自噬诱导Pax5 (Xbp1的mRNA表达受Pax5抑制)的降解, 增加Xbp1的mRNA的表达, 从而触发B细胞分化为IgA细胞, 增强机体免疫反应.
图4 S1PC诱导自噬激活

Figure 4 S1PC induces the activation of autophagy

综上所述, S1PC作为一种天然的含硫化合物, 通过多种机制发挥免疫调节作用. 其通过激活自噬来降解关键信号分子(如Pax5), 从而调节免疫细胞的分化和功能, 增强机体免疫反应. 这种机制不仅有助于增强肠道对病原体的免疫应答, 还可能对其他黏膜表面的免疫保护具有重要意义. 未来的研究可以进一步探讨S1PC在不同免疫系统中的作用机制, 以及其在临床应用中的潜力.

3.4 药代动力学

S1PC不仅有抗炎[97]、抗高血压[66,67]和抗动脉粥样硬化等作用[74]而且其具有独特的药代动力学特性. 这些特性与口服吸收、组织分布、代谢及排泄等生理功能密切相关, 全面探究这些方面有助于深入理解S1PC发挥药效的机制, 并为其临床合理应用和药物开发提供关键依据.
在吸收方面, 2015年Amano等[98]报道了SAC在大鼠和犬中的药代动力学和代谢途径, 表明SAC在大鼠和犬中都具有高口服吸收率, 可以在犬的血液中长期驻留. 2016年, 该小组[99]又提出了在大鼠和犬中SMC和S1PC的药代动力学和代谢途径. 研究显示S1PC在大鼠和狗中也表现出良好的吸收特性, 口服生物利用度(BA)较高. 在大鼠中, 口服S1PC的生物利用度达到88%, 半衰期(T1/2)为0.56 h, 这表明其能够有效地从胃肠道吸收进入血液循环. 与大鼠相似, S1PC经口给药导致犬的生物利用度约为100%(表2), 几乎能完全被吸收.
表2 大鼠和犬在口服给药后的药代动力学参数

Table 2 Pharmacokinetic parameters after oral administration in rats and dogs

Animal Compound T1/2/h cmaxc/(mg•L-1) BA/%
Rat S1PCa 0.56±0.072 4.2±0.92 88.0
Dog S1PCb 5.6±0.58 2.0±0.22 100

a The oral dose is 5 mg per kilogram of body weight. b The oral dose is 2 mg per kilogram of body weight. c Maximum blood concentration.

在组织分布方面, 相关研究虽未对S1PC在体内的详细分布情况进行全面阐述, 但在Amano等的研究中表示S1PC及其N-乙酰化代谢产物在大鼠和狗的血浆中被检测到, 表明它能够通过全身血液循环分布到全身各处, 从而到达多个组织和器官, 在不同部位发挥作用.
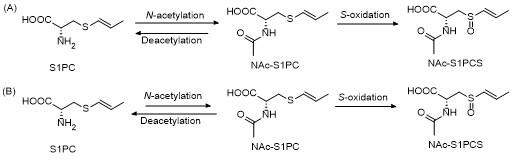
在代谢方面, Amano等[98-99]在研究中发现S1PC和 SAC在大鼠和犬中的药代动力学特征相似, 主要依靠肝脏和肾脏进行代谢, N-乙酰化是其主要的代谢途径(Scheme 9). 研究表明, S1PC在体内会被代谢为N-乙酰-S-1-丙烯基-L-半胱氨酸(NAc-S1PC)和N-乙酰-S-1-丙烯基-L-半胱氨酸亚砜(NAc-S1PCS)等代谢产物. 体外代谢实验显示, SAC和S1PC形成N-乙酰化代谢物的程度取决于肝脏和肾脏中N-乙酰化和去乙酰化的相对活性. 在大鼠体内, 几乎全部的S1PC剂量都以其N-乙酰化代谢产物的形式经尿液排出, 其中NAc-S1PC占比较大(表3). 而在犬体内, 虽然S1PC也会被代谢为NAc- S1PC, 但由于犬肾脏对N-乙酰化代谢物具有极高的脱乙酰化活性[98], 使得S1PC的N-乙酰化代谢物在犬尿液中的排泄量较少, 大部分S1PC可能在肾脏中被重吸收后重新进入血液循环, 从而使得在犬给药后血药浓度能够长时间维持[99,100]. 除此之外, Amano等还发现在人体肝脏中, NAc-S1PC的脱乙酰化活性高于S1PC的N-乙酰化活性, 这表明与犬的情况类似, 人在摄入S1PC后也可能在血液中保留较长时间.
图式9 S1PC在(A)大鼠和(B)犬中的代谢途径

Scheme 9 Metabolic pathways of S1PC in (A) rats and (B) dogs

表3 大鼠和犬在口服和静脉注射S1PC后S1PC、NAc-S1PC、NAc-S1PC的尿液和胆汁排泄参数

Table 3 Urine and biliary excretion parameters of S1PC, NAc-S1PC and NAc-S1PC in rats and dogs after oral and intravenous S1PC administration

Animal Excreta Excretiona/% of dose
S1PC NAc-S1PC NAc-S1PCS Total
Ratb Urine i.v. 2.2±0.42 73±2.8 13±1.1 88±2.2
Oral 3.1±1.5 69±1.4 15±1.2 87±1.2
Bile i.v. 0.35±0.15 0.26±0.18 0.01±0.01 0.62±0.34
Oral 0.10±0.04 0.22±0.06 0.02±0.004 0.34±0.09
Dogc Urine i.v. 0.21±0.06 0.86±0.44 2.3±1.2 3.4±1.7
Oral 0.22±0.14 0.62±0.34 3.3±2.4 4.2±2.7

a Twenty-four hours after administration in rats and forty-eight hours after administration in dogs, the excretion of S1PC, NAc-S1PC and NAc-S1PC in urine or bile (expressed as percentage of molar dose). b The single oral or injectable dose is 5 mg per kilogram of body weight. c The single oral or injectable dose is 2 mg per kilogram of body weight.

在排泄方面, S1PC及其代谢产物主要通过尿液和胆汁排出体外. 2016年Amano等[99]发现在大鼠中, S1PC经静脉注射或口服后, 其尿液排泄量较少, 约为2.2% (静脉注射)和3.1%(口服), 大部分以NAc-S1PC和NAc- S1PCS的形式经尿液排出, 胆汁中排出量较少, 总回收率为88%(静脉注射)和87%(口服). 在犬体内, S1PC的尿液排泄量同样较少, 静脉注射和口服后的排泄量分别为0.21%和0.22%(表3), 且NAc-S1PC和NAc-S1PCS在狗尿液中的排泄量远低于大鼠.
这些结果说明S1PC在体内具有口服吸收度高、分布广泛、代谢快等特点, 但S1PC在不同种属体内的消除半衰期存在差异, 在大鼠和犬中分别为0.56和5.6 h(表2), 这可能与不同物种的代谢酶活性和排泄途径差异有关[91-93], 因此在研究S1PC的药代动力学及将相关研究结果外推至人体时, 还需更为深入的研究.

4 AGE及S1PC的毒性与安全性

在探索天然产物对健康影响的进程中, 大蒜制剂凭借其多样的生物活性备受关注. 自古以来, 在民间医学中大蒜被用来治疗斑疹伤寒、痢疾、霍乱和流感等疾 病[101]. 随着人们对大蒜及大蒜制剂的研究, 揭示了其在免疫调节、抗炎和抗氧化等多方面的功效, 因而大蒜制剂的使用也在增加, 其毒性、安全性以及与处方药可能产生的相互作用也已逐渐成为人们关注的焦点.
已有研究报道了关于AGE和其成分安全性的问题[57,102-103]. 2000年, Liu等[104]报道, SAC有效降低了高达55%的胆固醇生成, 并且没有细胞毒性. 2002年, 一个月的大鼠亚急性毒性测试[57]结果表明, SAC具有较高的安全性, 口服无毒剂量大约在250 mg/kg. 2006年, Macan等[105]报道了AGE在12周内对华法林(抗凝剂)治疗的患者是安全的, 临床研究显示不会出现出血等不良事件. 2020年, Wlosinska等[106]通过对动脉粥样硬化患者的研究发现, 服用AGE (2400 mg/day) 1年后, 未出现不良反应. Amano等[103]探究了AGE中有机硫化物SAC、SMC与S1PC对人类细胞色素P450酶(CYP)的五种主要亚型(CYP1A2、2C9、2C19、2D6和3A4)酶活性的影响. 研究表明, 除了S1PC在最高浓度1 mmol/L时表现出对CYP3A4催化的反应有较小抑制作用外, SAC、SMC、S1PC均未对CYP的五种亚型酶催化的反应产生影响. 另外有研究表示, 大蒜主要成分可能对不同化合物诱导的毒性起治疗和保护作用[107]. 综上所述, SAC、SMC和S1PC通过影响CYP酶活性导致药物间相互作用的可能性较小, 而且大蒜中还有一部分成分能够对其他化合物导致的毒性有一定的保护治疗作用.

5 总结与展望

S1PC的天然来源较为广泛, 在洋葱和大蒜等葱属植物中均能分离提取到S1PC. 然而, 自然界中S1PC的含量较低, 且存在提取率低和分离工艺繁琐的问题, 因此其化学合成逐渐成为研究者的关注重点. 与直接在大蒜等植物中提取相比, 人工合成提高了S1PC的产率, 但因合成路线步骤多且条件苛刻, 只能在实验室中少量制备, 要想大量生产还需探索更为简便、成本低、易操作的化学合成方法和工艺.
多项实验表明, S1PC具有抗炎、抗高血压和调节免疫等诸多令人瞩目的生物学特性, 且毒性小, 安全性高. S1PC具有的药理作用及广泛的吸收和口服利用度, 未来将使其在食品、保健和医药等多个领域拥有广泛的应用前景. 我们可以大胆推测, 在未来S1PC可作为天然食品添加剂用于食品、饮料中, 让消费者在日常饮食中摄取到具有健康功效的成分, 提升食品的市场竞争力. 在保健品领域, 由于其良好的水溶性及口服吸收性, 非常适合制成各类保健品, 以胶囊、片剂或口服液的形式, 为免疫力低下人群提供增强免疫力的有效途径. 在医药领域, 对于慢性炎症相关疾病, 如动脉粥样硬化、炎症性肠病等, S1PC可通过抑制相关炎症信号和调节免疫细胞功能, 发挥治疗作用, 为开发新型针对性治疗药物提供新的方向.
(Lu, Y.)
[1]
Chauhan N. B. J. Nutr. Health Aging 2005, 9, 421.

PMID

[2]
Ray B.; Chauhan N. B.; Lahiri D. K. Curr. Med. Chem. 2011, 18, 3306.

DOI PMID

[3]
Reuter, H. Eds.: Garlic: The Science and Therapeutic Application of Allium Sativum L. and Related Species, Koch, H.; Lawson, L., Williams & Wilkins, Baltimore, 1996.

[4]
Gunther W. H. J. Sulfur Chem. 2013, 34, 208.

DOI

[5]
Borlinghaus J.; Albrecht F.; Gruhlke M. C.; Nwachukwu I. D.; Slusarenko A. J. Molecules 2014, 19, 12591.

DOI PMID

[6]
Lawson L.; Wang Z. Planta Med. 1993, 59, A688.

[7]
Freeman F.; Kodera Y. J. Agric. Food Chem. 1995, 43, 2332.

DOI

[8]
Amagase H.; Petesch B. L.; Matsuura H.; Kasuga S.; Itakura Y. J. Nutr. 2001, 131, 955S.

DOI

[9]
Namyslo J. C.; Stanitzek C. Synthesis 2006, 2006, 3367.

DOI

[10]
Lee S.-K.; Kim J.-N.; Choung D.-H.; Lee H.-K. Bull. Korean Chem. Soc. 2011, 32, 319.

DOI

[11]
Woo H.-J.; Cha G. S.; Kang M. J.; Kyung K. H. Food Sci. Biotechnol. 2022, 31, 253.

DOI

[12]
Liu X.; Zhou C.-Q. Food Ferment. Ind. 2019, 45, 282 (in Chinese).

(刘肖, 周才琼, 食品与发酵工业, 2019, 45, 282.)

DOI

[13]
Kodera Y.; Ushijima M.; Amano H.; Suzuki J.-I.; Matsutomo T. Molecules 2017, 22, 570.

DOI

[14]
Sheng X.-J.; Pang X.; Zhang J.-G.; Qiu J.; Qian Y.-Z.; Weng R. Qual. Saf. Agro-Prod. 2019, 49 (in Chinese).

(盛晓婧, 庞旭, 张继光, 邱静, 钱永忠, 翁瑞, 农产品质量与安全, 2019, 49.)

[15]
Bar M.; Binduga U. E.; Szychowski K. A. Antioxidants 2022, 11, 1345.

DOI

[16]
Jiménez-Amezcua I.; Sanz M. L.; Díez-Municio M.; Parker K.; Oruna-Concha M. J.; Soria A. C. LWT-Food Sci. Technol. 2025, 118003.

[17]
Block E. Sci. Am. 1985, 252, 114.

DOI PMID

[18]
Block E. Angew. Chem., Int. Ed. Engl. 1992, 31, 1135.

DOI

[19]
Carson J.; Boggs L. E. J. Org. Chem. 1966, 31, 2862.

DOI

[20]
Nishimura H.; Mizuguchi A.; Mizutani J. Tetrahedron Lett. 1975, 37, 3201.

[21]
Masters P. M.; Friedman M. J. Agric. Food Chem. 1979, 27, 507.

DOI

[22]
Liardon R.; Hurrell R. F. J. Agric. Food Chem. 1983, 31, 432.

DOI

[23]
Smith G. G.; Sivakua T. J. Org. Chem. 1983, 48, 627.

DOI

[24]
Parry R. J.; Sood G. R. J. Am. Chem. Soc. 1989, 111, 4514.

DOI

[25]
Herndon J. W. Encycl. Reagents Org. Synth. 2001, 1.

[26]
Nuzzo R. G.; Simon H. J.; San Filippo Jr J. J. Org. Chem. 1977, 42, 568.

DOI

[27]
Kodera Y.; Matsutomo T.; Itoh K. Planta Med. Lett. 2015, 2, e69.

[28]
Hell R. Planta 1997, 202, 138.

PMID

[29]
Lancaster J. E.; Shaw M. L.; Joyce M. D. P.; McCallum J. A.; McManus M. T. Plant Physiol. 2000, 122, 1269.

PMID

[30]
Turnbull A.; Galpin I.; Collin H. New Phytol. 1980, 85, 483.

DOI

[31]
Lancaster J. E.; Shaw M. L. Phytochemistry 1989, 28, 455.

DOI

[32]
Yoshimoto N.; Onuma M.; Mizuno S.; Sugino Y.; Nakabayashi R.; Imai S.; Tsuneyoshi T.; Sumi S. I.; Saito K. Plant J. 2015, 83, 941.

DOI

[33]
Yoshimoto N.; Yabe A.; Sugino Y.; Murakami S.; Sai-Ngam N.; Sumi S.-I.; Tsuneyoshi T.; Saito K. Front. Plant Sci. 2015, 5, 758.

[34]
Parry R. J.; Lii F. L. J. Am. Chem. Soc. 1991, 113, 4704.

DOI

[35]
Suzuki T.; Sugii M.; Kakimoto T. Chem. Pharm. Bull. 1961, 9, 77.

DOI

[36]
Matsutomo T.; Kodera Y. J. Nutr. 2016, 146, 450S.

DOI

[37]
Valentino H.; Campbell A. C.; Schuermann J. P.; Sultana N.; Nam H. G.; LeBlanc S.; Tanner J. J.; Sobrado P. J. Biol. Chem. 2020, 295, 11042.

DOI PMID

[38]
Li J.; Hansen B. G.; Ober J. A.; Kliebenstein D. J.; Halkier B. A. Plant Physiol. 2008, 148, 1721.

DOI

[39]
Li J.; Dadmohammadi Y.; Abbaspourrad A. Crit. Rev. Food Sci. Nutr. 2022, 62, 8265.

DOI

[40]
Hughes J.; Tregova A.; Tomsett A.; Jones M.; Cosstick R.; Collin H. Phytochemistry 2005, 66, 187.

PMID

[41]
Suzuki T.; Sugii M.; Kakimoto T.; Tsuboi N. Chem. Pharm. Bull. 1961, 9, 251.

DOI

[42]
Ziegler S.; Sticher O. Planta Med. 1989, 55, 372.

DOI PMID

[43]
Wu W.-H.; Xu Y.; Zhang Y.-D.; Yu Z.-J.; Pang Y.-M.; Qin L.; Wang Y. Chin. J. Biotechnol. 2024, 40, 1076 (in Chinese).

(吴文卉, 徐洋, 张雅迪, 于郑娇, 庞雨濛, 秦蕾, 王勇, 生物工程学报, 2024, 40, 1076.)

[44]
Weng R.; Sheng X.-J.; Liu P.-X.; Zhang J.-G.; Qiu J.; Qian Y.-Z. Sci. Agric. Sin. 2019, 52, 3199 (in Chinese).

(翁瑞, 盛晓婧, 刘平香, 张继光, 邱静, 钱永忠, 中国农业科学, 2019, 52, 3199.)

DOI

[45]
Brodnitz M. H.; Pascale J. V.; Van Derslice L. J. Agric. Food Chem. 1971, 19, 273.

DOI

[46]
Block E. J. Agric. Food Chem. 1993, 41, 692.

[47]
Zhou C.-L.; Hu X.-Y.; Chao C.; Li H.; Zhang S.-Y.; Yan X.-M.; Yang F.-M.; Li Q.-H. Adv. J. Food Sci. Technol. 2015, 9, 269.

DOI

[48]
Granroth B. Ann. Acad. Sci. Fenn. 1970, 154, 1.

[49]
Lawson L. D.; Wang Z.-Y. J.; Hughes B. G. Planta Med. 1991, 57, 363.

PMID

[50]
Lawson L. D.; Wang Z.-Y. J.; Hughes B. G. J. Nat. Prod. 1991, 54, 436.

DOI

[51]
Yamazaki Y.; Tokunaga T.; Okuno T. Nippon Shoyaku Kagaku Kaishi 2005, 52, 160

[52]
Kim S.; Park S.-L.; Lee S.; Lee S.-Y.; Ko S.; Yoo M. Food Chem. 2016, 211, 555.

DOI

[53]
Kawano S.; Yasui Y.; Hayashi M.; Shono T.; Chone Y.; Hirai S.; Aoki M. Shimadzu Hyoron 1997, 54, 3.

[54]
Nakamoto M.; Fujii T.; Matsutomo T.; Kodera Y. J. Agric. Food Chem. 2018, 66, 2891.

DOI

[55]
Liu P.; Weng R.; Sheng X.; Wang X.; Zhang W.; Qian Y.; Qiu J. Food Chem. 2020, 305, 125499.

DOI

[56]
Colín-González A. L.; Santana R. A.; Silva-Islas C. A.; Chánez-Cárdenas M. E.; Santamaría A.; Maldonado P. D. Oxid. Med. Cell. Longev. 2012, 2012, 907162.

[57]
Kodera Y.; Suzuki A.; Imada O.; Kasuga S.; Sumioka I.; Kanezawa A.; Taru N.; Fujikawa M.; Nagae S.; Masamoto K. J. Agric. Food Chem. 2002, 50, 622.

DOI

[58]
Rais N.; Ved A.; Ahmad R.; Kumar M.; Barbhai M. D.; Chandran D.; Dey A.; Dhumal S.; Senapathy M.; Deshmukh V. P. J. Funct. Foods 2023, 107, 105657.

DOI

[59]
Anand S. S.; Islam S.; Rosengren A.; Franzosi M. G.; Steyn K.; Yusufali A. H.; Keltai M.; Diaz R.; Rangarajan S.; Yusuf S. Eur. Heart J. 2008, 29, 932.

DOI

[60]
Ruggenenti P.; Schieppati A.; Remuzzi G. Lancet 2001, 357, 1601.

DOI PMID

[61]
Sim J. J.; Bhandari S. K.; Shi J.; Reynolds K.; Calhoun D. A.; Kalantar-Zadeh K.; Jacobsen S. J. Kidney Int. 2015, 88, 622.

DOI

[62]
Patel P.; Ordunez P.; DiPette D.; Escobar M. C.; Hassell T.; Wyss F.; Hennis A.; Asma S.; Angell S. J. Clin. Hypertens. 2016, 18, 1284.

DOI

[63]
Ried K. J. Nutr. 2016, 146, 389S.

DOI

[64]
Ried K.; Frank O.; Stocks N. Eur. J. Clin. Nutr. 2013, 67, 64.

DOI PMID

[65]
Ried K.; Frank O. R.; Stocks N. P. Maturitas 2010, 67, 144.

DOI

[66]
Matsutomo T.; Ushijima M.; Kodera Y.; Nakamoto M.; Takashima M.; Morihara N.; Tamura K. J. Chromatogr. B 2017, 1046, 147.

DOI

[67]
Matsutomo T.; Ushijima M.; Kunimura K.; Ohtani M. J. Pharm. Biomed. Anal. 2019, 168, 148.

DOI PMID

[68]
Ushijima M.; Takashima M.; Kunimura K.; Kodera Y.; Morihara N.; Tamura K. J. Pharm. Pharmacol. 2018, 70, 559.

DOI

[69]
Li M.; Yun W.; Wang G.; Li A.; Gao J.; He Q. Front. Pharmacol. 2022, 13, 954938.

DOI

[70]
Ohtani M.; Nishimura T. Biomed. Rep. 2020, 12, 99.

[71]
Suzuki J.-I.; Kodera Y.; Miki S.; Ushijima M.; Takashima M.; Matsutomo T.; Morihara N. Sci. Rep. 2018, 8, 14148.

DOI

[72]
Suzuki J.-I.; Miki S.; Ushijima M.; Kodera Y. Exp. Ther. Med. 2020, 19, 1570.

[73]
Kunimura K.; Miki S.; Takashima M.; Suzuki J.-I. Cell Commun. Signal 2021, 19, 1.

DOI

[74]
Miki S.; Suzuki J.-I.; Takashima M.; Ishida M.; Kokubo H.; Yoshizumi M. Sci. Rep. 2021, 11, 22469.

DOI

[75]
Sun J.; Huang Q.; Li S.; Meng F.; Li X.; Gong X. Mol. Immunol. 2018, 95, 107.

DOI

[76]
Lu J.; Cao Q.; Zheng D.; Sun Y.; Wang C.; Yu X.; Wang Y.; Lee V. W.; Zheng G.; Tan T. K. Kidney Int. 2013, 84, 745.

DOI

[77]
Liu C.; Li Y.; Yu J.; Feng L.; Hou S.; Liu Y.; Guo M.; Xie Y.; Meng J.; Zhang H. PLOS ONE 2013, 8, e54841.

[78]
Kang N.; Moon E.; Cho C.; Pyo S. Nutr. Res. 2001, 21, 617.

DOI

[79]
Hassouna I.; Ibrahim H.; Abdel Gaffar F.; El-Elaimy I.; Abdel Latif H. Immunopharmacol. Immunotoxicol. 2015, 37, 442.

DOI

[80]
Arellano Buendia A. S.; Tostado González M.; Sánchez Reyes O.; García Arroyo F. E.; Argüello García R.; Tapia E.; Sánchez Lozada L. G.; Osorio Alonso H. Int. J. Mol. Sci. 2018, 19, 3107.

DOI

[81]
Nakamoto M.; Kunimura K.; Suzuki J. I.; Kodera Y. Exp. Ther. Med. 2020, 19, 1550.

DOI PMID

[82]
Chang H.-P.; Chen Y.-H. Nutrition 2005, 21, 530.

DOI

[83]
Chang H.-P.; Huang S.-Y.; Chen Y.-H. J. Agric. Food Chem. 2005, 53, 2530.

DOI

[84]
Liu K.-L.; Chen H.-W.; Wang R.-Y.; Lei Y.-P.; Sheen L.-Y.; Lii C.-K. J. Agric. Food Chem. 2006, 54, 3472.

DOI

[85]
Suzuki J.-I.; Yamaguchi T.; Matsutomo T.; Amano H.; Morihara N.; Kodera Y. Nutrition 2016, 32, 884.

DOI

[86]
Fagarasan S.; Honjo T. Nat. Rev. Immunol. 2003, 3, 63.

DOI PMID

[87]
Macpherson A. J.; Geuking M. B.; McCoy K. D. Trends Immunol. 2012, 33, 160.

DOI PMID

[88]
Macpherson A.; McCoy K.; Johansen F.; Brandtzaeg P. Mucosal Immunology 2008, 1, 11.

DOI PMID

[89]
Mizushima N.; Yoshimori T.; Ohsumi Y. Annu. Rev. Cell Dev. Biol. 2011, 27, 107.

DOI PMID

[90]
Eskelinen E.-L.; Saftig P. Biochim. Biophys. Acta 2009, 1793, 664.

[91]
Saha S.; Panigrahi D. P.; Patil S.; Bhutia S. K. Biomed. Pharmacother. 2018, 104, 485.

DOI

[92]
Cuervo A. M.; Macian F. Mol. Aspects Med. 2012, 33, 2.

DOI PMID

[93]
Arroyo D. S.; Gaviglio E. A.; Ramos J. M. P.; Bussi C.; Rodriguez-Galan M. C.; Iribarren P. Int. Immunopharmacol. 2014, 18, 55.

DOI

[94]
Deretic V.; Levine B. Autophagy 2018, 14, 243.

DOI PMID

[95]
Into T.; Horie T.; Inomata M.; Gohda J.; Inoue J.-I.; Murakami Y.; Niida S. Sci. Rep. 2017, 7, 1009.

DOI

[96]
Riffelmacher T.; Richter F. C.; Simon A. K. Autophagy 2018, 14, 199.

DOI PMID

[97]
Nango H.; Ohtani M. PLOS ONE 2023, 18, e0284713.

[98]
Amano H.; Kazamori D.; Itoh K.; Kodera Y. Drug Metab. Dispos. 2015, 43, 749.

DOI

[99]
Amano H.; Kazamori D.; Itoh K. Xenobiotica 2016, 46, 1017.

DOI

[100]
Nakamoto M.; Kunimura K.; Ohtani M. Exp. Ther. Med. 2025, 29, 1.

[101]
Petrovska B. B.; Cekovska S. Pharmacogn. Rev. 2010, 4, 106.

DOI

[102]
Harauma A.; Moriguchi T. J. Nutr. 2006, 136, 769S.

DOI

[103]
Amano H.; Kazamori D.; Itoh K. Biol. Pharm. Bull. 2016, 39, 1701.

DOI

[104]
Liu L.; Yeh Y. Y. Lipids 2000, 35, 197.

DOI PMID

[105]
Macan H.; Uykimpang R.; Alconcel M.; Takasu J.; Razon R.; Amagase H.; Niihara Y. J. Nutr. 2006, 136, 793S.

DOI

[106]
Wlosinska M.; Nilsson A.-C.; Hlebowicz J.; Hauggaard A.; Kjellin M.; Fakhro M.; Lindstedt S. BMC Complement. Med. Ther. 2020, 20, 1.

DOI

[107]
Dorrigiv M.; Zareiyan A.; Hosseinzadeh H. Phytother. Res. 2020, 34, 1770.

DOI PMID

文章导航

/