


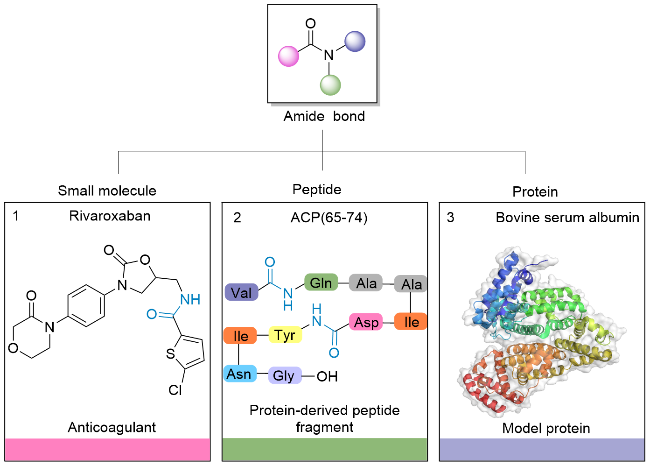
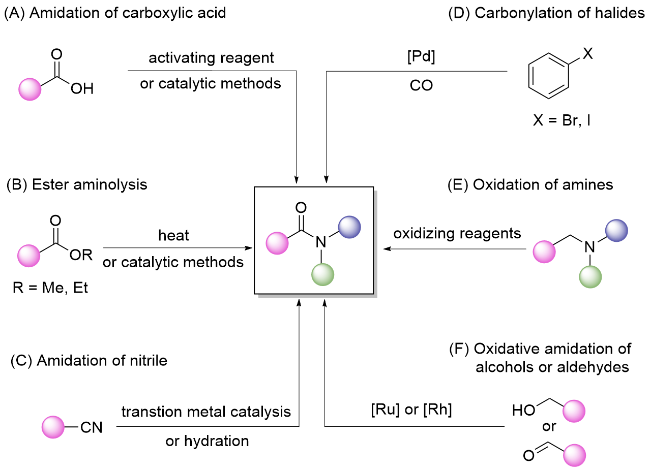
酰胺键广泛存在于小分子、多肽及蛋白质中(Scheme 1), 其高效构建始终是合成化学与化学生物学中的核心问题之一[1]. 尽管酰胺键构筑的方法已得以发展, 但在温和、水相条件下, 由低活化态底物(如醛或醇)直接实现选择性酰胺化仍具挑战性. 现有策略多依赖高活化酰基试剂或复杂酶体系(Scheme 2), 限制了其在绿色与生物相容条件下的应用前景[2].
近年来, 围绕温和条件下构建酰胺键的生物催化策略逐渐受到关注. 例如, 基于脂肪酶(如CAL-B)催化的酯胺交换反应已被广泛用于酰胺键构建[3], 但该类方法通常依赖活化酯底物, 且底物适用范围仍有待进一步拓展[4]. 此外, 腺嘌呤核苷三磷酸(ATP)依赖型酰胺合成酶及连接酶能够实现羧酸与胺的偶联, 但通常需要ATP等高能辅因子驱动, 并涉及多步活化过程, 体系相对复杂[5].
氧化还原酶可实现“氧化-酰胺化”转化, 凭借反应条件温和等优势备受关注. Mutti等[6]报道了醇脱氢酶(alcohol dehydrogenases, ADHs)催化醇与胺的氧化偶联反应, 通过半缩胺(hemiaminal)中间体实现酰胺键构建, 在碱性条件下实现了多种脂肪醇与芳香醇底物的转化. 然而, 该体系通常依赖较高pH环境及高浓度氨缓冲体系, 并表现出一定的酶-底物匹配依赖性; 同时, 反应过程中醛中间体可能进一步氧化为羧酸副产物, 使得反应选择性与路径控制仍面临一定挑战.
因此, 若能够利用酶催化循环中的关键活性中间体并调控其反应活性, 有望实现反应路径的调控与重构. 醛脱氢酶(ALDH)天然催化醛氧化为羧酸[7], 其反应过程经历半硫缩醛和硫酯中间体, 最终经水解生成酸[8]. 北京大学化学与分子工程学院雷晓光团队[9]基于该反应机理, 将醛脱氢酶(ALDH)重构为氧化型酰胺合成酶(OxiAm). 该策略实现了“醛+胺→酰胺”的非天然转化, 其关键在于调控催化过程中硫酯中间体的反应活性, 通过削弱原有的水解路径, 并增强胺对中间体的进攻能力, 使反应由以水解为主转变为以胺解为主, 从而实现反应选择性重塑, 并非仅提升酶活性.
酶工程改造过程中, 通过组合突变(R166M/E259L、T234G、L163G等)系统调控活性位点微环境. 其中, T234G拓宽胺通道, 以促进底物进入, L163G扩大底物结合空间; 进一步引入P156V等突变后, 有效提升芳香胺底物的反应性. 反应机理上, 该体系仍沿经典ALDH催化路径运行, 但通过活性位点微环境调控, 实现反应终点的重定向; 在野生型酶中, 硫酯中间体主要经历水解生成羧酸; 而在工程化OxiAm中, R166M和E259L等突变通过提高活性口袋疏水性, 并削弱水解相关催化作用, 从而抑制水解路径, 促进后续的胺解过程, 展示了在天然酶框架内实现非天然反应转化的有效策略(Scheme 3).
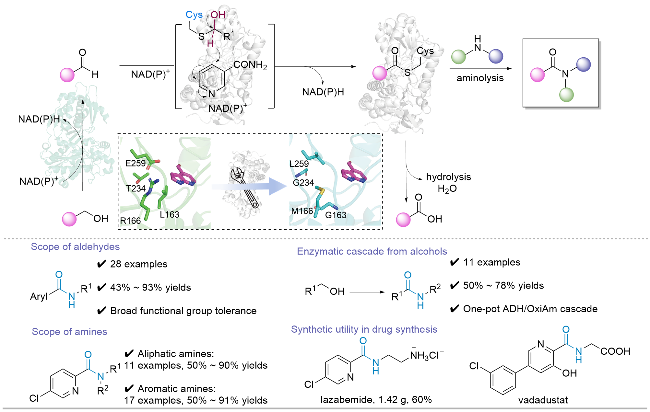


在反应普适性方面, 该体系在温和条件下, 对多种醛和胺底物表现出良好的适用性与官能团耐受性. 进一步结合醇脱氢酶XylB与辅因子再生体系TpNOX, 构建“醇→醛→酰胺”的酶级联反应, 将酰胺键构建的起点拓展至更低活化态底物. 该方法也应用于拉扎贝胺(Lazabemide)的克级合成, 并成功实现伐达度司他(Vadadustat)和伊马替尼(Imatinib)关键中间体的构建, 体现出良好的应用潜力(Scheme 3).
综上所述, 雷晓光团队通过对关键中间体以及反应路径的调控, 实现了对ALDH催化功能的重塑, 将其由天然醛脱氢酶重塑为酰胺合成酶. 该工作不仅拓展了醛脱氢酶的催化功能范围, 也为通过微环境调控, 进而实现酶催化反应路径的重构, 提供了重要范例, 有望推动酰胺化反应在复杂分子合成中的应用.
(Cheng, F.)